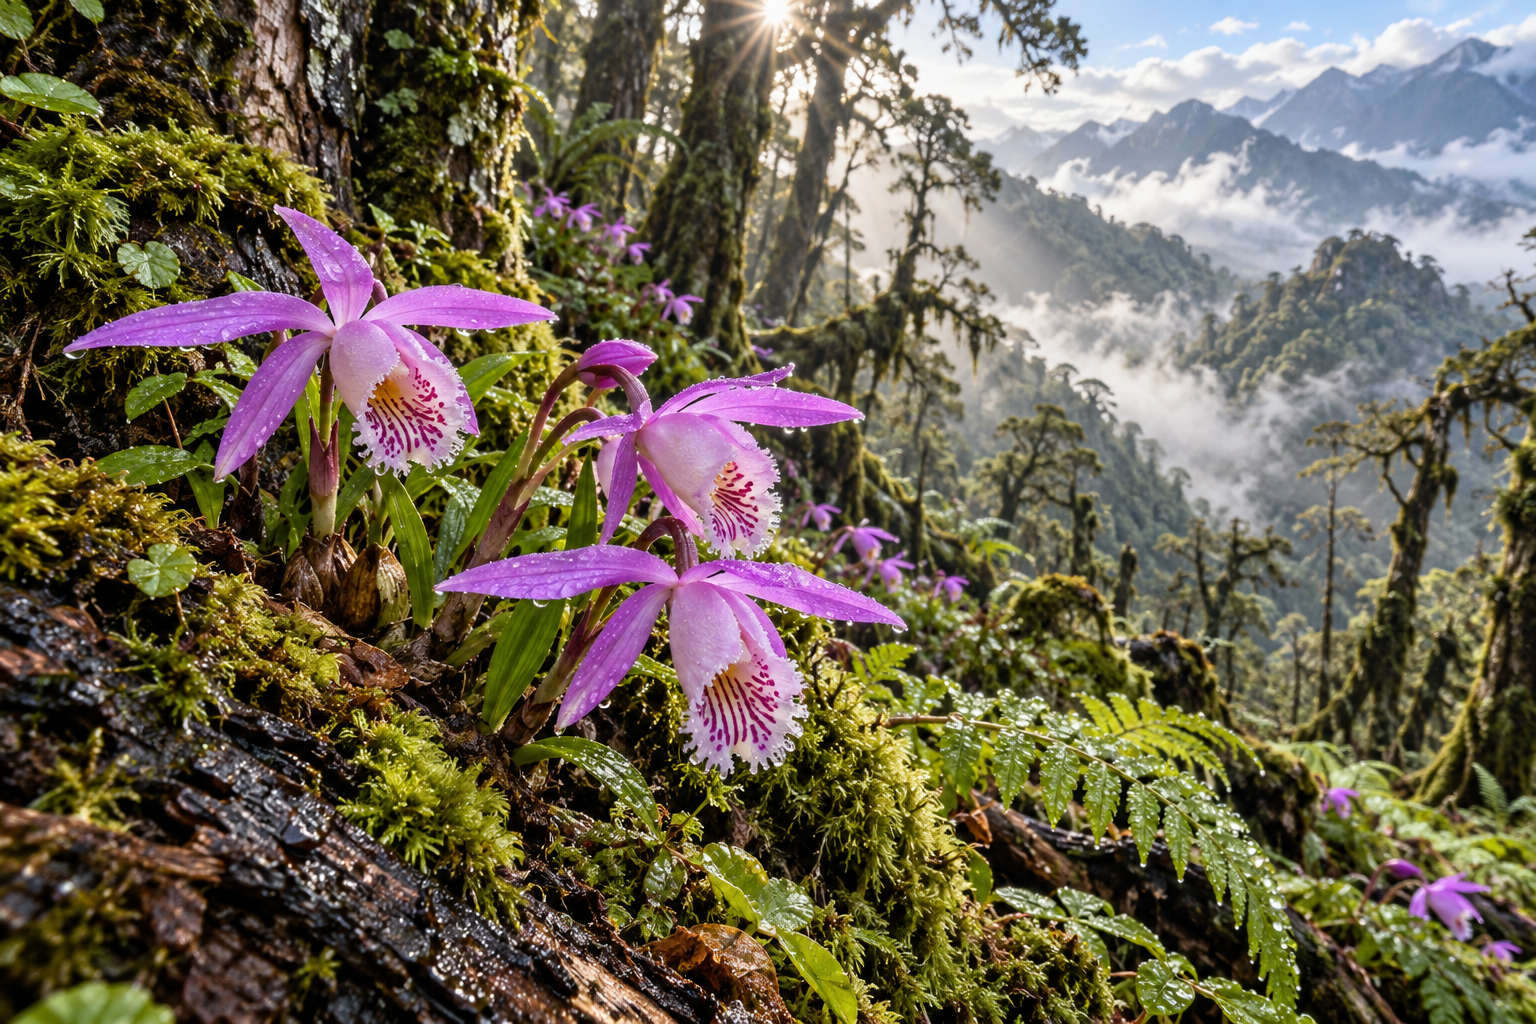

引言:横断山脉东缘的林冠秘境
在四川盆地西南边缘与青藏高原隆升过渡地带,大相岭山脉蜿蜒矗立,构成了华西雨屏带的核心地理屏障。位于雅安市荥经县境内的龙苍沟国家森林公园,常年受到充沛暖湿气流的浸润,孕育了典型的高山与亚高山常绿落叶阔叶混交林。在这里,层叠葱郁的古树枝干、倒木与阴湿崖壁上,附生着一种极具辨识度的兰科瑰宝——独蒜兰(Pleione bulbocodioides)。作为中国特有的珍稀兰科附生或附石植物,独蒜兰已被列入中国《国家重点保护野生植物名录》二级保护序列。解析其在龙苍沟高湿环境中的解剖结构、水分代谢、真菌共生网络及传粉机制,对于揭示横断山区植物多样性演化与推动物种就地保护具有深远的科学价值。
一、物种起源与分类系统地位
独蒜兰隶属于天门冬目兰科树兰亚科(Epidendroideae)沙唇兰族(Arethuseae)独蒜兰属(Pleione)。该属由英国植物学家大卫·唐(David Don)于1825年依据希腊神话中普勒俄涅(Pleione)女神之名建立,全球约有20余个原生种,主要集中分布于东喜马拉雅至中国西南山地。独蒜兰属于属内的典型代表种,具有鲜明的生活史特征:秋季落叶休眠、早春假鳞茎基部萌芽抽薹、花先于叶开放。
其俗名“独蒜兰”源于其特殊的肉质营养储存器官——假鳞茎(Pseudobulb)。该器官多为圆锥形、卵球形或近烧瓶状,通常单生于根状茎节处,表面光泽且富含黏质多糖,外形酷似大蒜。这种在演化过程中特化的假鳞茎,不仅是其营养繁殖与养分储备的中心,更是其适应恶劣附生生境的生理支柱。
二、附生微生境与水汽交换生理机制
龙苍沟地处华西雨屏区核心,年降雨量高达1800至2200毫米,林内相对湿度常年维持在85%以上,云雾缭绕且日照散射率高。独蒜兰并非扎根于寻常的矿质土壤,而是典型地附生于胸径巨大的壳斗科、樟科老树主干分叉处,或附石生长在覆盖深厚苔藓的石灰岩与砂岩陡壁上。这种极端微生境表现出明显的“生理性干旱”特征——尽管大气湿度极高,但树皮与石壁表层缺乏深层持水机制,水分流失极快。
为克服这一生存瓶颈,独蒜兰构建了一整套精密的水汽捕获与调控体系:
其一,苔藓共生群落的水分缓冲垫效应。龙苍沟附生群落表层覆盖着厚达数厘米的锦鸡儿苔、金发藓等藓类垫状结构。苔藓层依靠其独特的毛细管结构捕获林冠截留的雨水和雾气冷凝水,为独蒜兰短而纤细的假根系统营造了一个温湿度高度稳定的“微型水库”,有效规避了偶发干旱事件造成的根系脱水损伤。
其二,海绵状根被与气孔昼夜节律调控。独蒜兰的附生根表层发育有数层死细胞组成的根被(Velamen)。在降雨时,根被能迅速吸收并储存水分;而在无降雨期间,干燥的根被细胞充满空气,形成热绝缘层并减缓内部水分蒸腾。此外,其叶片结构与假鳞茎在水分胁迫下展现出向景天酸代谢(CAM)途径演化的可塑性特征,通过夜间吸收二氧化碳、减少白天蒸腾损耗,实现水汽利用效率的最大化。
三、花部精巧解剖与演化传粉策略
独蒜兰的花器形态堪称兰科植物适应性辐射演化的杰作。春季气温回升时,假鳞茎基部的混合芽迅速萌动,抽出单朵顶生的大型花,花径通常可达6至10厘米,颜色跨越淡粉红、洋红至紫红,极具视觉冲击力。
在形态解剖上,花被片由3枚萼片和2枚花瓣组成,呈狭倒披针形或线状倒披针形;而其演化核心集中于特化的下位唇瓣(Labellum)。独蒜兰的唇瓣宽大凹陷呈扇形或近圆形,边缘常具不规则细齿、波状皱褶乃至流苏状裂片。唇瓣内侧喉部纵向排列着数条平行的薄片状褶片(Keels),并散布着深紫红色至红褐色的斑点与条纹。
这些构造并非单纯的装饰,而是高度协同的传粉引导器。研究表明,独蒜兰采取了典型的“食源欺骗性传粉”(Food-deceptive pollination)策略:其花朵并不分泌真正的花蜜花糖,而是依靠艳丽的花色、唇瓣喉部的视觉斑纹引导信号以及模拟蜜源植物的微弱气味挥发物,诱引越冬后饥饿的高山熊蜂属(Bombus spp.)或隧蜂科昆虫前来访花。当熊蜂顺着纵褶片构成的“通道”深入花心寻找花蜜时,其背部必然触碰合蕊柱前端的药帽,黏盘随后将花粉块牢固粘贴于昆虫背部;昆虫在访问下一朵花时,便将花粉块精准送入受粉柱头腔内,完成了高效的异花授粉。
四、兰菌共生网络:营养获取的隐形通道
像绝大多数兰科植物一样,独蒜兰的种子极其微小,呈粉尘状,成千上万颗种子仅由数百个未分化的胚细胞构成,内部几乎不含任何胚乳养分储备。在野外自然条件下,其种子在附生基质上的萌发与幼苗建立,必须严格依赖适宜的菌根真菌(Mycorrhizal Fungi)侵染。
在龙苍沟阴湿腐殖层中,角担菌属(Ceratobasidium)、胶膜菌属(Tulasnella)等担子菌门真菌菌丝穿透未萌发的独蒜兰种皮,形成特化的菌丝团(Pelotons)。幼胚通过消化菌丝团获取必须的碳水化合物、氨基酸与无机盐,完成从原球茎(Protocorm)到分化出真叶和假鳞茎的艰难跃迁。即使在成株阶段,独蒜兰的根系仍与真菌群落维持着互惠共生关系,真菌不仅辅助吸收微生境中极度匮乏的磷、氮元素,更在抵御低温寒害和病原菌入侵中发挥了不可替代的生态屏障作用。
五、致濒机理与前沿保护繁育实践
尽管独蒜兰具备强大的生理耐受演化特征,但其在现代自然界面临的生境破碎化压力依然严峻。致濒因素主要体现在以下层面:
- 微生境不可替代性。独蒜兰对林冠郁闭度(通常在0.6至0.8之间)、古树基质粗糙度及苔藓层完整度有极端依赖。林木采伐、森林边缘效应加剧或气候干燥化均会瞬间打破苔藓微水库的平衡,导致居群大面积溃退;
- 繁殖更新瓶颈。依赖特定熊蜂传粉与特定真菌共生,导致其野外结实率和自然萌发率极低;
- 历史非法采挖压力。由于其花大艳丽且入中药“山慈菇”范畴,民间偶有盗挖行为,极易对其脆弱的野生斑块化种群造成毁灭性打击。
近年来,针对独蒜兰的保护工作在四川大相岭自然保护区及龙苍沟国家森林公园全面铺开,已形成“就地严管、迁地繁育、野化回归”的闭环保护路径:
首先是微生境与原生地庇护。通过设立林冠监测样方与红外巡护系统,全面杜绝野生兰科植物盗采,重点维护大相岭雨屏带原生古树群落及林下苔藓生境的完整性。
其次是组织培养与无菌播种技术的突破。科研机构依托人工授粉获取饱满蒴果,利用植物组织培养技术,在无菌且含特定植物生长调节剂的培养基中实现种子的规模化离体萌发与原球茎诱导分化。同时,通过分离纯化本土高效优良兰菌菌株,开展“真菌促萌共培养”实验,大幅提升了种苗的生理抗逆性。
最后是人工种群的野化回归。经过驯化炼苗的独蒜兰幼苗,在专业科研人员引导下,被重新固定于龙苍沟核心栖息地的适生树干苔藓层上,建立了数个长期监测回归样地。监测数据表明,回归植株在适应野外水汽节律后,已展现出自主假鳞茎更替与春季开花的生命力。
结语
独蒜兰在龙苍沟林冠间的绽放,是横断山脉数百万年物种演化与生态系统精妙平衡的生动注脚。保护这一株株寄宿于古木苔藓间的高山幽兰,不仅是保护一个单一的国家重点保护物种,更是维护华西雨屏区脆弱附生生态网络与高山森林生物多样性的核心要义。